ポイント
- RNAの連結に使われる酵素Rnl1について、逆反応によるRNA分解が標準的な条件下で起こることを実証
- RNA配列や反応条件によって逆反応の起こりやすさが変化
- RNA分解を抑えつつ連結を行うための指針が、Rnl1を用いるRNAの研究・製造の現場で活用されることに期待
概要
東京科学大学(Science Tokyo)生命理工学院 生命理工学系の足立希美大学院生、未来社会創成硏究院 地球生命研究所(ELSI)の高萩航研究員(現 大阪大学産業科学研究所特任助教)、藤島皓介准教授らの研究チームは、RNAの連結や修飾に広く用いられる酵素T4 RNAリガーゼ1(Rnl1)[用語1]が引き起こす「逆反応」によるRNA分解が、RNAの塩基の種類と反応条件に強く依存することを明らかにしました。
Rnl1は一本鎖RNAの末端同士をつなぐ酵素で、マイクロRNA(miRNA)[用語2]の解析に用いるシーケンスライブラリの調製やRNAの標識、環状RNAの合成など、RNA研究やバイオテクノロジーに欠かせない道具となっています。Rnl1は、連結とは逆向きの反応によってRNAを分解することが以前から知られていましたが、どのような配列のRNAが分解されやすいのか、また実際の使用条件でどのように抑えればよいのかは明らかになっていませんでした。
研究チームは、蛍光標識した20塩基の4種類のRNAホモポリマー[用語3](polyU、polyC、polyA、polyG)を用いて、反応産物を1塩基の分解能で解析しました。その結果、標準的な連結反応の条件でも逆反応によるRNA分解が生じること、また、その効率はpolyU、polyC、polyAの順に高く、polyGでは分解が検出されないことが明らかになりました。また、逆反応はAMP[用語4]によって促進される一方で、過剰なATP[用語5]、37℃での反応、相補鎖との二本鎖形成により抑制されることを示しました。さらに、実験結果と確率論的シミュレーションの比較から、Rnl1による分解はRNA鎖の内部を切断する「Endo mode」型の機構で進んでいる可能性が高いことを明らかにしました。
本研究の成果は、Rnl1を用いたRNA実験において意図しない分解を防ぎ、データの信頼性を高めるための実践的な指針となることが期待されます。本成果は、10月28日付(現地時間)の「ChemBioChem」誌に掲載されました。
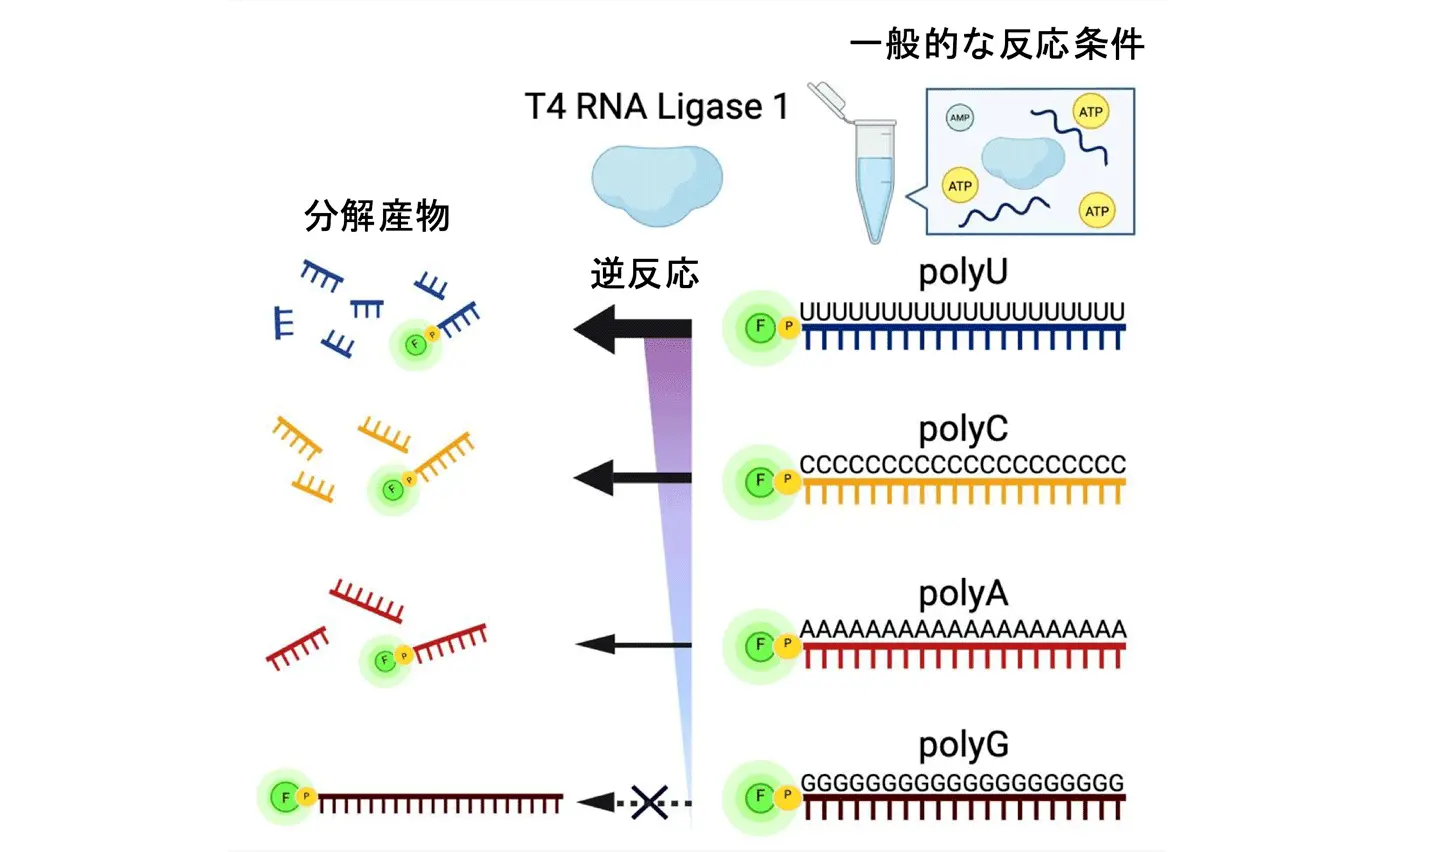
標準的な連結反応条件下では、polyU、polyC、polyAの順に分解されやすく(矢印の太さ)、polyGでは分解が見られない。(Credit: Adachi et al. 2026 ChemBioChemのGraphical abstractから改変)
背景
RNAは、遺伝情報を伝えるだけでなく、遺伝子発現の制御や触媒作用などの機能を有し、生命活動を支える多様な役割を担う生体分子です。近年では天然に存在するRNAに加え、人工的に合成・改変したRNAの解析や利用も進んでおり、生命科学の基礎研究だけでなくRNA創薬などの応用分野においても、その重要性がますます高まっています。RNAの合成・改変を行う上で重要な酵素として、Rnl1が挙げられます。Rnl1は、大腸菌に感染するバクテリオファージT4に由来する酵素であり、アデノシン三リン酸(ATP)を利用してRNAの5′末端のリン酸基と3′末端のヒドロキシ基をつなぎ、ホスホジエステル結合[用語6])を形成します。また幅広い一本鎖RNAを基質として利用できることから、RNAシーケンスにおけるアダプターの連結、RNAの末端標識、環状RNAの合成など、さまざまなRNA解析技術に広く利用されています。
図2に示したように、Rnl1による連結反応は、まず(i)ATPを用いて酵素自身がアデノシン一リン酸(AMP)と結合する(アデニル化[用語7])、(ii)そのAMPがドナーRNA[用語8]の5′末端のリン酸基に受け渡される、(iii)アクセプターRNA[用語9]の3′末端のヒドロキシ基がアデニル化RNAを攻撃してRNA同士が連結され、AMPが放出される、という3つの段階で進みます。これらの段階はいずれも可逆的であり、とくに第3段階が逆向きに進むとRNAが切断・分解されます。この逆反応はAMPによって促進され、マグネシウムイオンを必要とします。マグネシウムイオンとRnl1は通常の連結反応に用いる溶液に必ず含まれ、AMPは連結反応に伴って生じるため、逆反応は日常的な実験の中で気づかないうちに起こり得ます。さらに、逆反応で生じたRNA断片はAMPが付加した状態となり、ATPがなくても再び連結される可能性があります。こうした予期せぬ分解と再連結は配列の組み換わりを引き起こし、実験データの誤った解釈につながるおそれがあります。しかし、逆反応の起こりやすさとRNAの配列の関係や、制御するための反応条件については十分に理解されていませんでした。
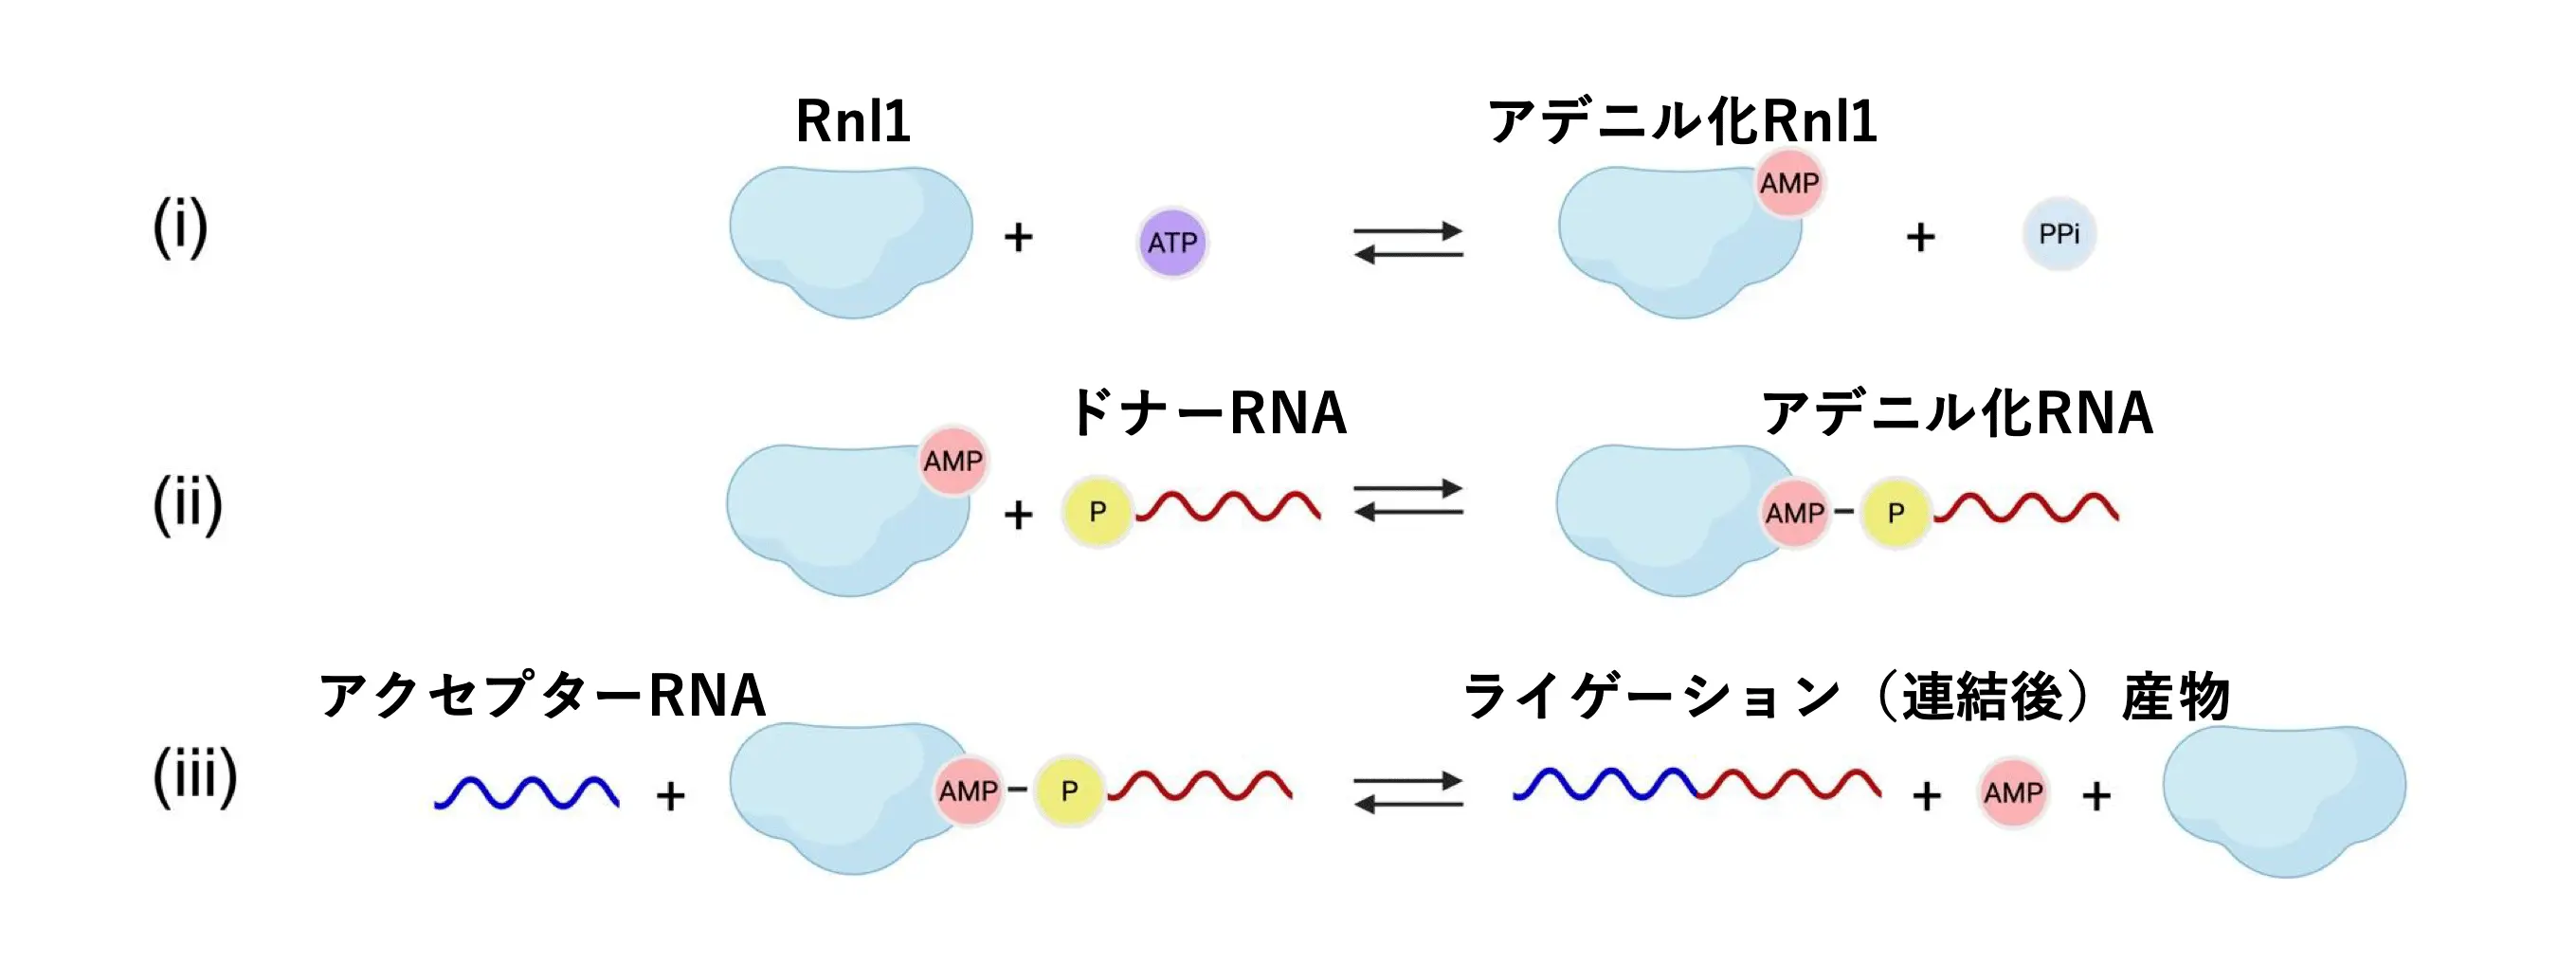
(i)ATPによるRnl1のアデニル化反応。Rnl1–AMP中間体が形成されピロリン酸(PPi)が放出される。(ii)ドナーRNAの5′末端リン酸基へのAMPの転移、(iii)アクセプターRNAの3′末端ヒドロキシ基による攻撃とAMPの放出によってRNAが連結される。各段階はいずれも可逆的であり、第3段階の逆反応ではRNAが分解され、AMPが付加した短いRNAが生じる。先行研究[参考文献1]により、過剰なAMPは分解を促進し、過剰なATPは分解を抑制することが明らかになっている。分解産物のアデニル化RNAはATPがなくてもドナーとして再び連結に使われうる。(Credit: Adachi et al. 2026 ChemBioChemのFigure 1から改変)
研究成果
研究チームはまず4種類の20塩基RNAホモポリマー(polyU、polyC、polyA、polyG)それぞれに対して5′末端を蛍光色素FAM(6-カルボキシフルオレセイン)[用語10]で標識したアクセプターRNAと、5′末端をリン酸化したドナーRNAを混合し、標準的な連結反応条件(1 mM ATP、16℃、1時間)でRnl1と反応させました。反応後、従来の核酸染色よりも感度の高い高解像度の電気泳動により、1塩基の長さの違いまで見分けて反応産物を蛍光検出しました。その結果、polyU、polyC、polyAを用いた連結反応後の溶液からは、20塩基より短い分解産物が検出されました(図3a、図3b)。このRNA分解反応はRNA分解酵素の阻害剤を加えても起こり、Rnl1を加えない場合には見られなかったことから、実験者由来のRNA分解酵素の混入ではなく、Rnl1による連結反応における逆反応に起因するものであることが確認されました。RNA分解はpolyU>polyC>polyAを用いた場合の順に顕著で、逆反応の起こりやすさには塩基の種類が影響していることが示唆されました。polyGは分解も連結も受けにくいことが確認されましたが、これはpolyGが形成するG四重鎖(G-quadruplex)[用語11])と呼ばれる安定な立体構造によるものと考えられます。論文では構造を取りにくい配列を用いることで、グアニン(G)の位置でも分解が起こることを示しています。
またホモポリマーに加えて、4種類の天然のマイクロRNA(miRNA)に対する逆反応も検証しました(図3c)。結果として、miRNAにおいても標準的な連結反応条件及びAMP過剰の条件で切断が観察され、その切断の速さやパターンは配列によって異なっていました。このことから、逆反応はホモポリマーだけでなく天然のRNA配列に対しても起こり得ること、とくにウラシルやシトシンが連続する領域を含むRNAを扱う際には注意が必要であることが示唆されました。
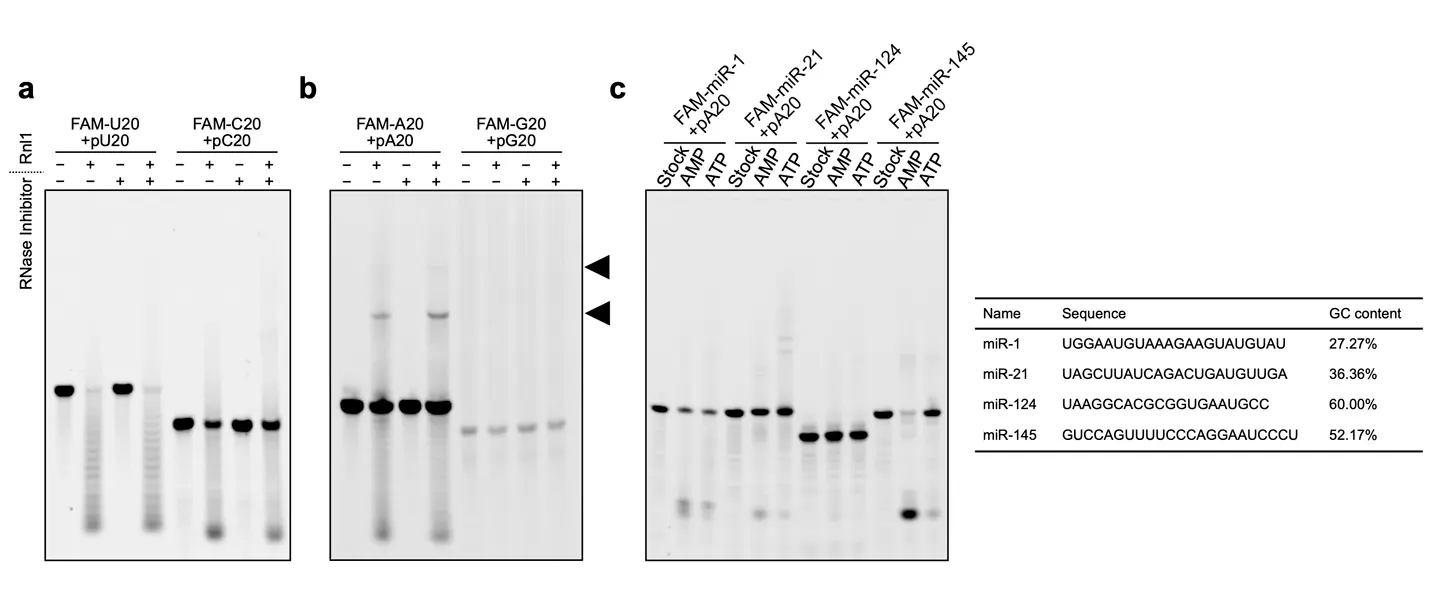
(a)polyU(FAM-U20+pU20)とpolyC(FAM-C20+pC20)、(b)polyA(FAM-A20+pA20)とpolyG(FAM-G20+pG20)を、1 mM ATP存在下、16℃で1時間Rnl1と反応させた結果。各レーンで最も濃いバンドが20塩基の基質RNAで、それより上のバンドは連結産物、下の梯子状のバンドは1塩基ずつ長さの異なる分解産物である。polyAで観察された連結産物を黒矢印で示す。(c)miRNAを、1 mM ATP存在下あるいは200 µM AMP存在下、16℃で1時間Rn1と反応させた結果。表は各miRNAの配列とGC含量を示す。(Credit: Adachi et al. 2026 ChemBioChemのFigure 2とFigureS13から改変・抜粋)
さらに、反応温度、および二本鎖形成反応が逆反応にどのような影響を与えるのかを調べました。まず、分解が効率よく進む条件である200 μMのAMP存在下で反応温度を16、23、30、37℃と変えたところ、polyU、polyC、polyAのいずれでも37℃で逆反応が大きく抑制されました(図4A)。Rnl1は37 ℃でも連結活性を保つことが知られていることから、この抑制は酵素の失活によるものではないと考えられます。また、温度変化に伴うpH変化の小さいMOPS緩衝液を用いた場合においても同様の傾向が見られたことから、反応液のpH変化だけでも説明ができません。今回の実験結果にもとづくと、酵素の構造の揺らぎやRNAとの結合状態が変化し、逆反応が選択的に抑えられている可能性が考えられます。次に、最も分解されやすかったpolyUについて、相補鎖となるpolyA(A20)を加えて二本鎖を形成させたところ、分解は顕著に抑えられ、期待される40塩基の連結産物が時間とともに蓄積しました(図4B)。一方、相補鎖を形成しないpolyU(U20)を加えた場合には、時間とともに分解が進行しました。二本鎖の形成によってRNA末端の柔軟性が制限され、酵素の活性部位にRNA鎖が物理的に接近しにくくなることで、分解が抑えられ、結果的に連結が促進されたと考えられます。
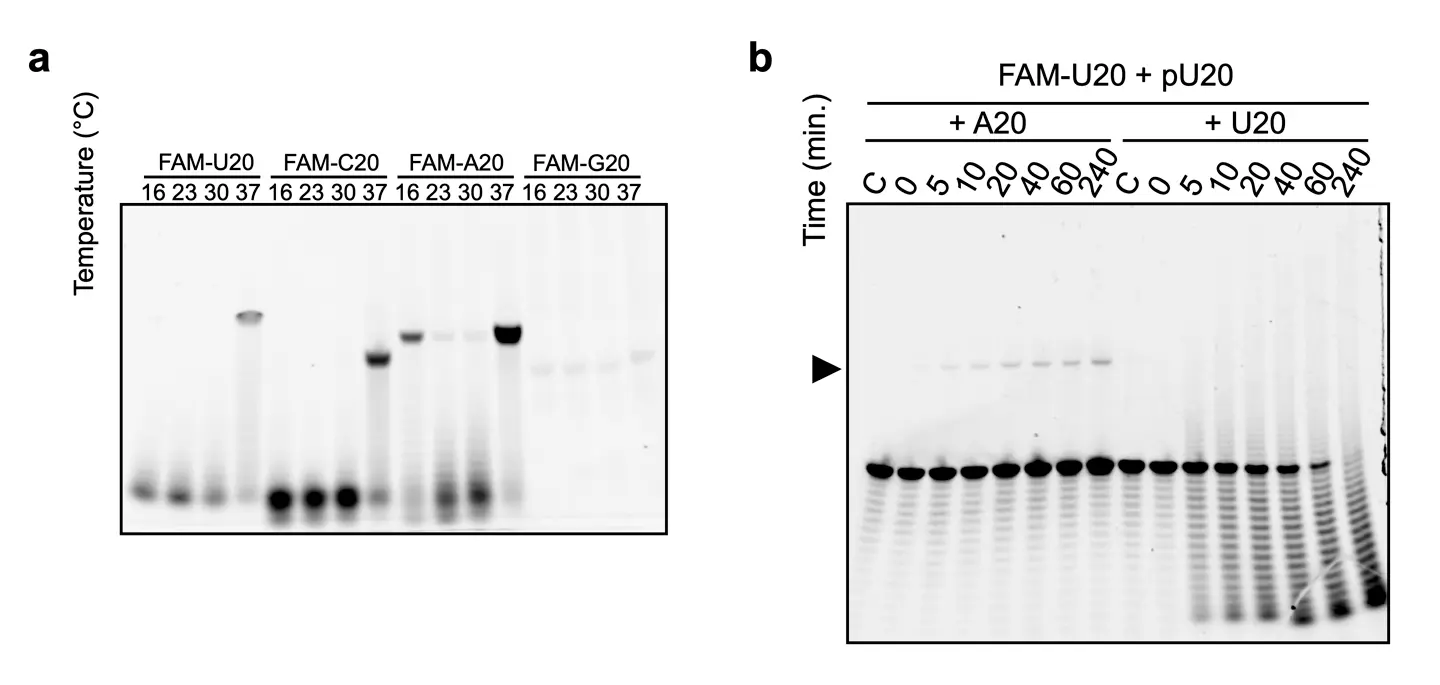
(a)200 μM AMP存在下、16、23、30、37℃で反応させた結果。polyU、polyC、polyAでは37℃で逆反応が大きく抑制された。polyGはいずれの温度でも分解が検出されなかった。(b)FAM-U20とpU20に、相補鎖となるA20(左)または相補鎖を形成しないU20(右)を加え、1 mM ATP存在下、16℃で0~240分反応させた結果。左端のレーンCはRnl1添加前にEDTAを加えたネガティブコントロール。A20の存在下では分解が抑えられ、40塩基の連結産物(黒矢印)が時間とともに蓄積した。(Credit: Adachi et al. 2026 ChemBioChemのFigure 5及び6から抜粋)
最後に、Rnl1がRNAを切断するメカニズムに迫るため、polyUの分解産物の長さ分布の時間変化を解析しました(図5A)。3′末端から1塩基ずつ段階的に切り離す「Nonprocesive exo mode」型、3′末端から1塩基ずつ連続して多数の塩基を切り離す「Processive exo mode」型、RNA鎖の内部を切断する「Endo mode」型の3つの分解モデルを想定し(図5B)、Gillespie法[用語12]に基づく確率論的シミュレーションを行いました。分解で生じたアデニル化断片が再連結される過程も含めて計算し、実験結果と比較したところ、「Endo mode」型モデルが分解産物と再連結産物の長さ分布の時間変化を最もよく再現しました(図5C)。これらの結果は、Rnl1による分解が、連結反応の第3段階が逆行してRNA内部のホスホジエステル結合に作用する「AMP駆動型のエンドヌクレアーゼ活性」として現れることを示しています。鎖の内部にのみRNAを含むキメラ基質でも切断が起きたことは、この機構と整合します。
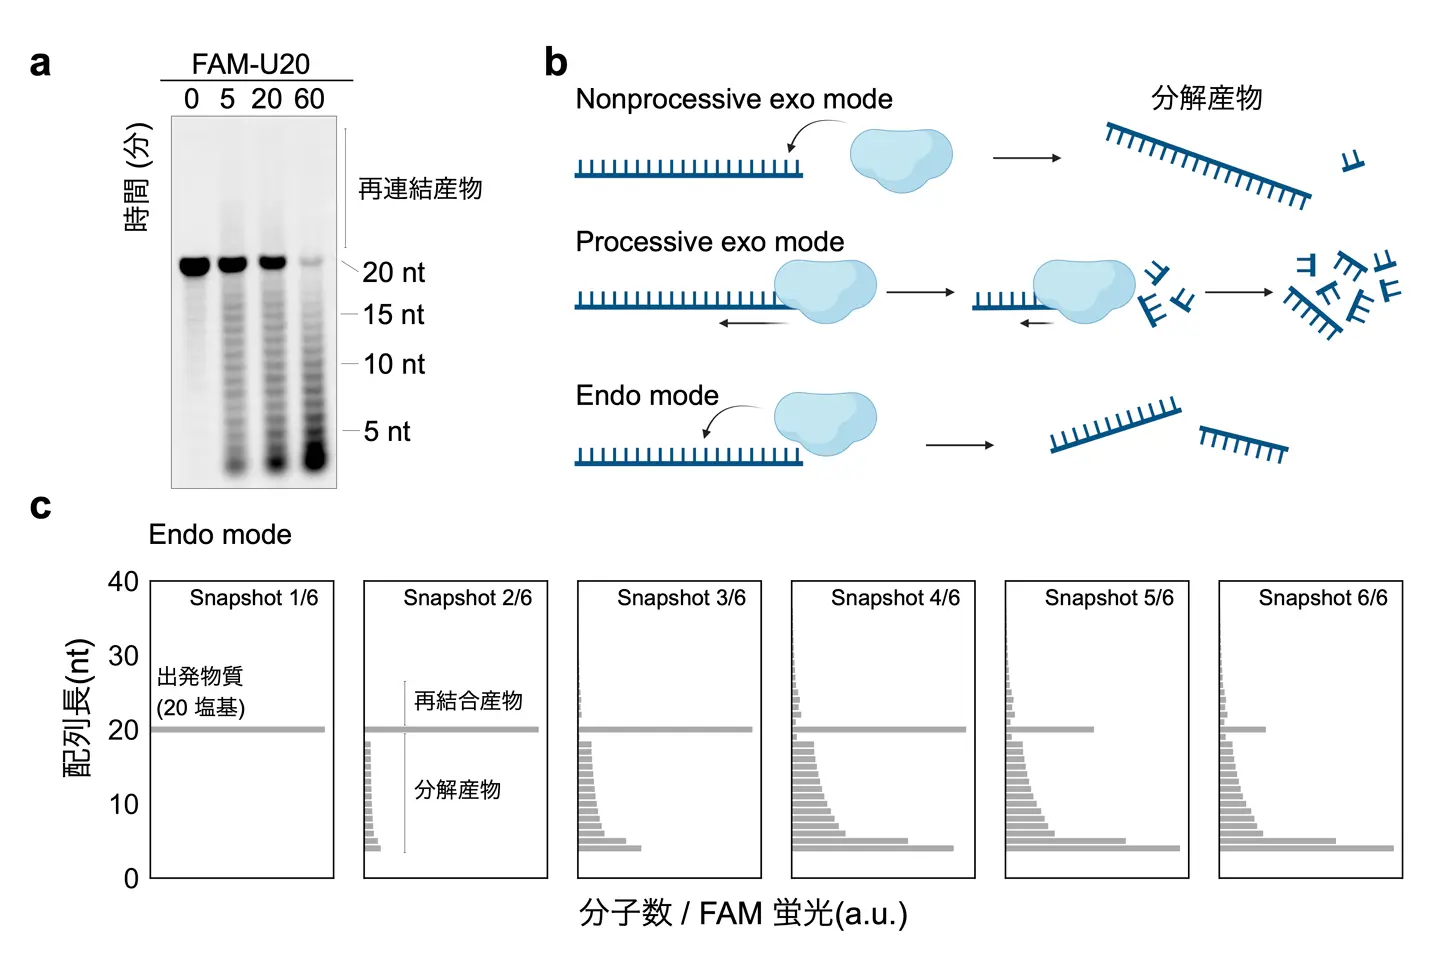
(a)20 μM AMP存在下、16℃でpolyU (FAM-U20)を0、5、20、60分反応させた結果。20塩基の基質の減少とともに短い分解産物が蓄積し、20塩基より上には再連結産物が見られる。(b)検討した3つの分解モデル(Nonprocessive exo mode、Processive exo mode、Endo mode)の模式図。(c)Endo modeモデルによるシミュレーション結果。1,000回の独立した試行の平均値を6つの時点のスナップショットとして示す。スナップショット2/6、4/6、6/6は、それぞれ実験の5、20、60分における長さ分布をよく再現した。(Credit: Adachi et al. 2026 ChemBioChemのFigure 7から一部抜粋・改変)
社会的インパクト
Rnl1は数十年にわたりRNA研究の標準的な酵素として使われ、現在もmiRNAのシーケンス解析や環状RNAの合成など多くの実験手法を支えています。本研究は、そうした日常的な実験条件の中でもRnl1自身がRNAの分解や配列の組み換わりを引き起こし得ることを具体的なデータで示し、その起こりやすさがRNAの塩基の種類や反応条件によって大きく変わることを明らかにしました。特に、反応温度、および相補鎖による二本鎖形成などの本研究が示した条件は、Rnl1を用いるさまざまな実験の信頼性と再現性を高めるための実践的な指針となります。RNAを基盤とする医薬品や診断技術の開発が進むなか、こうした基盤的な酵素の性質を正しく理解することは、基礎研究から産業応用まで幅広い分野に波及効果をもたらすと期待されます。
今後の展開
本研究では、RNAホモポリマーと一部の天然のmiRNA配列を用いて逆反応の特徴を明らかにしましたが、多様な配列や立体構造を持つ天然のRNAにおける逆反応の起こりやすさについては、さらなる検証が必要です。また、高温で逆反応が選択的に抑えられる仕組みや、塩基の種類によって分解効率が異なる分子機構についても、あらかじめアデニル化した基質を用いて反応の各段階を個別に調べることなどにより、解明が進むと期待されます。RNAを「つなぐ」と同時に「切る」こともできるRnl1の二面性を理解することは、RNAの連結・修飾を制御するための技術の高度化につながると考えられます。
付記
本研究は、株式会社トヨタコンポン研究所の探索プログラムに採択された研究課題「多成分・多分散系の普遍構造の数理的探索」(課題番号:JY255001Mn)の支援を受けて実施されました。
参考文献
- [参考文献1]
- Krug, M. and Uhlenbeck, O. C., “Reversal of T4 RNA ligase,” Biochemistry, 21, 1858–1864 (1982).
用語説明
- [用語1]
- T4 RNAリガーゼ1(Rnl1):大腸菌に感染するバクテリオファージT4に由来する酵素。一本鎖RNAの末端同士をホスホジエステル結合でつなぐ反応を触媒し、RNA研究やバイオテクノロジーで広く利用されている。
- [用語2]
- マイクロRNA(miRNA):20~25塩基程度の短い非コードRNAで、標的となるメッセンジャーRNAに結合して遺伝子の発現を調節する。
- [用語3]
- ホモポリマー:同じ種類の構成単位が繰り返しつながった分子。本研究では、ウラシル(U)、シトシン(C)、アデニン(A)、グアニン(G)のいずれか1種類の塩基を持つ核酸が20個連続でつながったRNAを用いた。
- [用語4]
- AMP:アデノシン一リン酸(AMP)はリン酸基を1つ持つ分子。Rnl1による連結反応では、ATPに由来するAMPが酵素やRNAに一時的に付加し、連結の際に放出される。
- [用語5]
- ATP:アデノシン三リン酸(ATP)は生体内でエネルギーの受け渡しに使われる分子で、リン酸基を3つ持つ。
- [用語6]
- ホスホジエステル結合:RNAやDNAの鎖において、隣り合う核酸同士をリン酸基を介してつなぐ化学結合。
- [用語7]
- アデニル化:分子にAMPが結合すること。Rnl1による連結反応では、酵素自身、次いでドナーRNAの5′末端が順にアデニル化される。
- [用語8]
- ドナーRNA:連結反応において、5′末端にリン酸基を持ちアデニル化されて活性化される側のRNAをドナーと呼ぶ。
- [用語9]
- アクセプターRNA:連結反応において、3′末端のヒドロキシ基でドナーと結合する側のRNAをアクセプターと呼ぶ。
- [用語10]
- FAM(6-カルボキシフルオレセイン):核酸の標識などに広く用いられる緑色の蛍光色素。
- [用語11]
- G四重鎖(G-quadruplex):グアニン(G)に富むDNAやRNA配列において、4つのグアニンが水素結合で平面状に集まった構造が積み重なって形成される安定な立体構造。
- [用語12]
- Gillespie法:化学反応や個体群動態などについて、次に起こる事象とその時間を確率的に決定し、分子数や個体数などのゆらぎを伴う時間変化をシミュレーションする計算手法。
論文情報
- 掲載誌:
- ChemBioChem
- タイトル:
- The Dual Nature of RNA Ligation and Degradation by T4 RNA Ligase 1: Insights Into an AMP-Driven, Nucleobase-Dependent Reverse Reaction
- 著者:
- Nozomi Adachi, Wataru Takahagi, Shohei Terazawa, Ryoji F. Abe, Nao Masuda, and Kosuke Fujishima
- DOI:
- 10.1002/cbic.70559
研究者プロフィール
足立 希美 Nozomi Adachi
東京科学大学 生命理工学院 生命理工学系 修士課程2年
研究分野:生化学・RNA工学
高萩 航 Wataru Takahagi
東京科学大学 未来社会創成研究院 地球生命研究所 研究員 (研究当時、現 大阪大学産業科学研究所 特任助教)
研究分野:電気化学・計算化学・分析化学
寺澤 昌平 Shohei Terazawa
東京科学大学 生命理工学院 生命理工学系 博士後期課程3年
研究分野:分子生物学・進化分子工学
安部 稜士 Ryoji F. Abe
東京科学大学 生命理工学院 生命理工学系 修士課程2年
研究分野:生物物理学・数理生物学
増田 直旺 Nao Masuda
東京科学大学 未来社会創成研究院 地球生命研究所 研究員
研究分野:分子進化学・タンパク質工学
藤島 皓介 Kosuke Fujishima
東京科学大学 未来社会創成研究院 地球生命研究所 准教授
研究分野:合成生物学・宇宙生物学